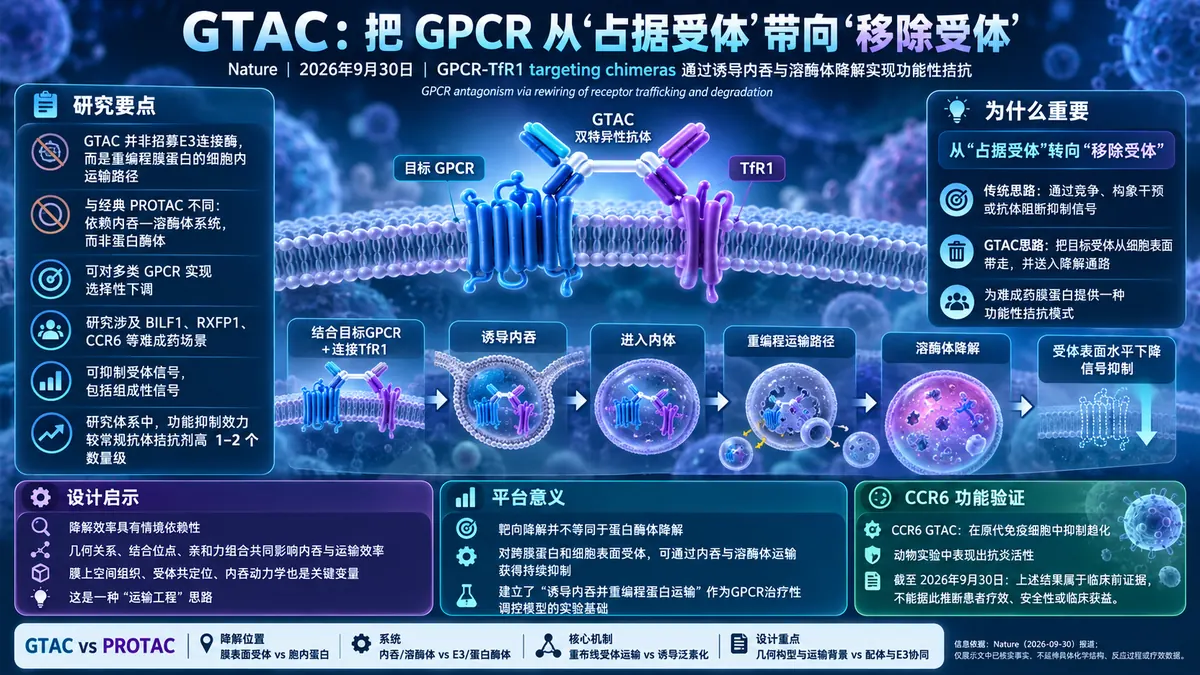
2026年9月30日,Nature发表一项围绕G蛋白偶联受体(GPCR)的靶向降解研究。研究团队提出GPCR-TfR1 targeting chimeras(GTACs)策略,通过双特异性抗体同时连接目标GPCR与转铁蛋白受体1(TfR1),诱导受体内吞并重新导向溶酶体降解。与依赖蛋白酶体的经典PROTAC机制不同,GTAC的核心并不是招募E3连接酶,而是重编程膜蛋白的细胞内运输路径。
GPCR是药物研发中最重要的靶点家族之一,但并非所有GPCR都容易通过传统小分子或阻断型抗体获得充分调控。此次研究显示,GTAC可对多类GPCR实现选择性下调,研究对象包括BILF1、RXFP1和CCR6,分别涉及病毒、肿瘤及免疫相关生物学场景。论文由此把“诱导内吞—溶酶体降解”进一步拓展为针对难成药膜蛋白的一种功能性拮抗模式。
从“占据受体”转向“移除受体”
传统GPCR拮抗剂通常依赖配体竞争、构象干预或抗体阻断来抑制信号,而GTAC采取了不同思路:不是持续占据受体以阻断功能,而是通过TfR1介导的内吞过程,把目标GPCR从细胞表面转运至细胞内,并最终进入溶酶体降解通路。
研究显示,这一机制可以带来较为彻底的受体信号抑制,其中包括组成性信号。与常规抗体拮抗剂相比,GTAC在研究体系中的功能抑制效力高出一个至两个数量级以上。这里的关键并不仅是结合目标GPCR,而是将“结合”转化为能够持续推动受体内吞、运输和降解的细胞过程。
设计关键在于几何关系与亲和力的“情境依赖”
论文还通过蛋白工程和多色活细胞成像分析GTAC的细胞机制。研究指出,降解效果并非简单由“对两个靶点都结合得越强越好”决定,而具有明显的情境依赖性。目标GPCR与TfR1之间的结合几何关系、结合位点和亲和力组合,会影响双特异性分子形成复合物后的内吞效率及后续运输路径。
这一发现对更广泛的靶向降解技术具有启发意义。对于细胞表面蛋白而言,决定降解效率的变量不仅包括分子本身的结合能力,还包括膜上空间组织、受体共定位、内吞动力学以及进入不同细胞内运输通路的概率。换言之,GTAC展示的是一种“运输工程”思路:通过合理设计分子连接方式,把目标蛋白导向原本并不会高效进入的降解路径。
从工程化模型延伸至免疫功能验证
该研究的主要实验包括工程化细胞模型,同时也对CCR6相关功能进行了进一步验证。CCR6 GTAC能够在原代免疫细胞中抑制趋化,并在动物实验中表现出抗炎活性。这些结果说明,GTAC机制并不局限于人工表达体系,而可以在更接近生理环境的免疫细胞及体内实验中产生功能影响。
不过,截至2026年9月30日,这些结果仍应明确视为临床前证据。现有研究支持GTAC作为GPCR调控平台的机制可行性及进一步研发价值,但不能据此推断患者中的疗效、安全性或临床获益。
GTAC与PROTAC的边界需要明确
- 降解位置不同:GTAC利用内吞和溶酶体系统处理膜表面受体,而经典PROTAC通常依赖胞内E3连接酶和蛋白酶体。
- 作用对象不同:GTAC此次重点解决的是GPCR等膜蛋白的功能性下调问题。
- 核心机制不同:GTAC强调通过TfR1重新布线受体运输,而不是通过诱导泛素化实现蛋白酶体降解。
- 设计逻辑不同:除靶点亲和力外,双抗几何构型、结合位点和细胞运输背景共同决定降解表现。
对靶向降解领域意味着什么
这项研究的价值不只是增加了一种GPCR拮抗形式,更重要的是强化了一个正在扩展的概念:靶向降解并不必然等同于“蛋白酶体降解”。对于跨膜蛋白和细胞表面受体,通过操控内吞和溶酶体运输,同样可以获得持续而深度的功能抑制。
从平台角度看,GTAC把TfR1作为进入内吞通路的抓手,将目标GPCR与细胞自身的运输和降解系统连接起来。未来此类策略的关键问题,将包括不同GPCR和不同细胞背景下的可迁移性,以及如何系统优化结合几何、亲和力和运输效率。就9月30日发表的这项工作而言,其最清晰的贡献,是建立了“诱导内吞并重编程蛋白运输”作为GPCR治疗性调控模型的实验基础。
配图说明:AI生成配图,仅用于辅助呈现文章主题。 配图仅为AI主题示意,不是论文原图或实验数据。